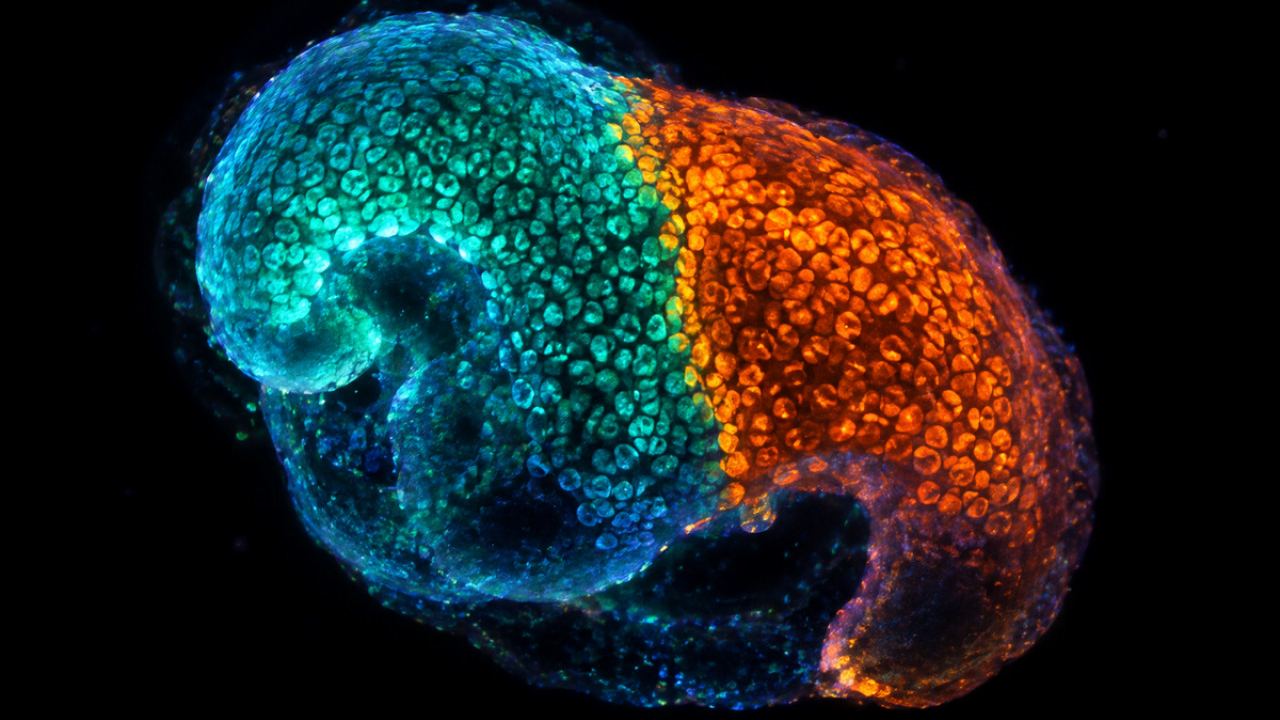
Десетилетия наред лабораторните протоколи за отглеждане на нервна тъкан се базираха на една елегантна, но очевидно непълна хипотеза. Приемаше се, че ембрионалната нервна тръба започва като заготовка с „преден“ идентитет, а впоследствие морфогени като ретинолова киселина, Wnt и FGF физически „избутват“ част от клетките към формиране на заден мозък, продълговат мозък и гръбначен мозък. Този модел изглеждаше логичен върху хартия, но в реален контекст срещаше постоянни технологични лимити: опитите да се пренастроят зрели или частично диференцирани прогенитори до точно определени двигателни неврони често завършваха с клетъчна смърт или аберативна генна експресия.
Данните, публикувани от изследователската група на Кайл Лоу в Станфорд, базирани на единично-клетъчно РНК секвениране и анализ на хроматиновата достъпност по време на гаструлация, посочват съвсем различна оперативна реалност. Гаструлацията е онзи критичен физически момент, в който клетъчната маса се реорганизира в три основни зародишни слоя. Изследвайки ранните ембриони, Станфордският екип установи, че още преди завършването на този процес съществуват две транскрипционно независими групи прогениторни клетки. Едната популация е програмирана изключително за изграждане на предния и средния мозък – структурата, отговорна за висшите когнитивни функции, речта и асоциативното мислене. Втората популация, развиваща се по напълно отделен епигенетичен маршрут, дава началото на задния мозък, моста, продълговатия мозък и малкия мозък, които контролират дишането, вазомоторния тон, преглъщането и моторната координация.
Границата между тези две територии не е просто анатомична линия, чертана на ръка. Тя се дефинира от сурова биохимична бариера между транскрипционните фактори Otx2 и Gbx2. В продължение на години ембриолозите използваха тази граница просто като маркер за определяне на средно-задномозъчния организатор. Новите архивни и геномни данни обаче показват, че на ниво триизмерна организация на ДНК (хроматинова архитектура) клетките от двете страни на границата Otx2/Gbx2 са опаковани по коренно различен начин. За клетките от задномозъчната линия критичните за предния мозък енхансери са физически блокирани, и обратно. Опитите едната клетка да се превърне в другата с прости химически сигнали в лабораторни условия са били еквивалент на опит да се строи спретната сграда по погрешна архитектурна скица.