В дискусиите относно еволюционната морфология редовно се пропуска фундаментален архивен факт: най-древните представители на животинското царство са живели милиони години, без дори да загатнат за наличието на специализирана отделителна, дихателна или храносмилателна система. Преди около 558 милиона години, по време на едиакарския период, плитководните морски дъна са били обитавани от организми, чиято класификация десетилетия наред поддържаше истинска архивна мъгла сред палеонтолозите.
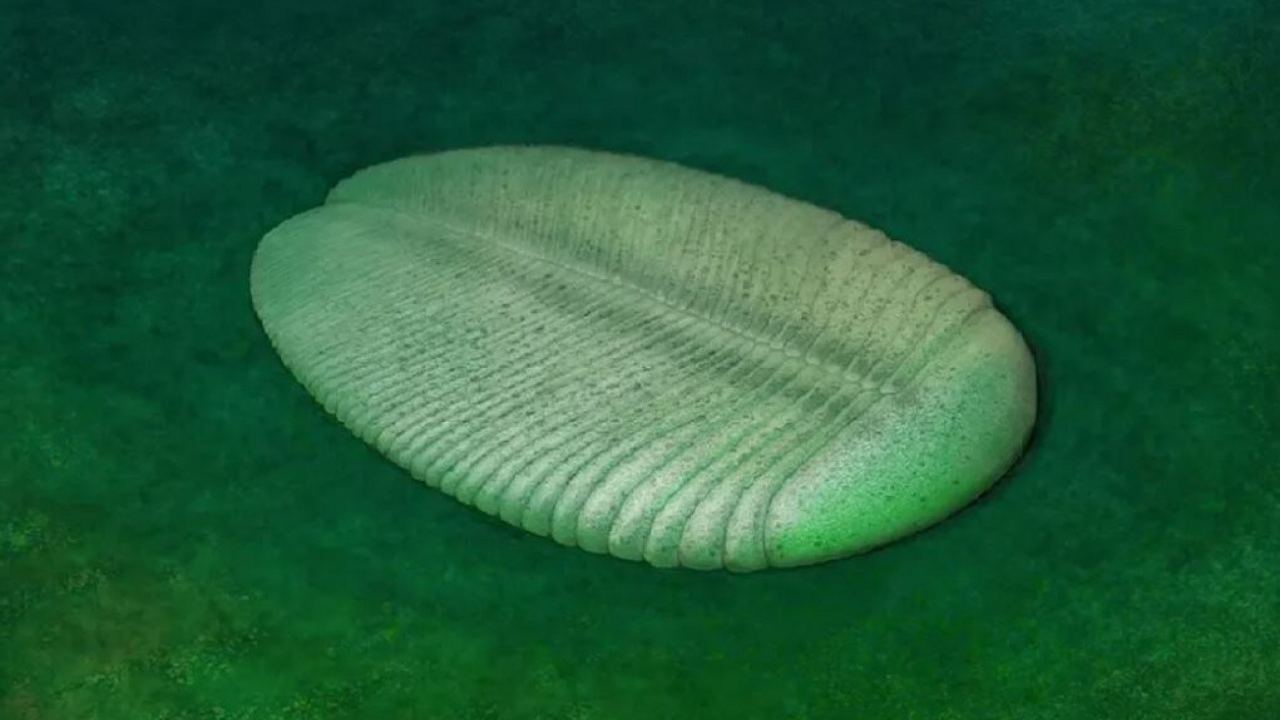
Типичен пример са проартикулатите – загадъчни, сплескани фосили с лентовидна или сегментирана структура, при които липсват каквито и да било следи от уста, черва, анус или съдова мрежа. Поради липсата на анатомични белези, характерни за съвременните многоклетъчни, родове като Dickinsonia и Yorgia дълго време биваха отписвани като гигантски протозои, вид вендобионти или дори изчезнали клончета от царството на гъбите.
Едва през 2018 година екипът на палеобиохимика Иля Бобровски от Австралийския национален университет публикува в списание Science резултатите от органичен анализ на фосилизирана Dickinsonia, намерени в скалните блокове край Бяло море в Русия. Чрез хроматографско изследване на молекулярно ниво в пробите бяха открити остатъци от холестеран – биомаркер, принадлежащ изключително на животинския метаболизъм. Структурата съдържаше над 93% стероиди от животински тип, което категорично затвори спора. Тези същества са били животни, макар че по външен вид и вътрешна организация са напомняли по-скоро на органичен килим, отколкото на познатите ни биологични видове.
Причината тези ранни организми да преживяват без вътрешна инфраструктура се крие в елементарната физика на осмозата и дифузията. При екстремно високо съотношение между площ и обем, каквото притежават листоподобните проартикулати, хранителните вещества и кислородът проникват директно през клетъчната стена от заобикалящия ги бактериален мат. Когато обаче промяната в условията на околната среда заставя биологичните видове да изоставят този пасивен модел, възниква първата сериозна логистична криза на метаболизма.
Тук се появява разграничението, наложено от екологичната роля. Всички живи системи са подчинени на термодинамичния баланс: приемане на субстрат, обработка и отделяне на отпадъчен продукт. Растенията функционират като първични производители. За тяхната биохимия са необходими три основни компонента: слънчева радиация, въглероден диоксид и вода с разтворени минерални соли. Нито слънчевата светлина, нито атмосферните газове изискват гонене или преследване.
Растителният подход към проблема с ресурсите е чисто пространствен. Вместо да инвестира енергия в съкращаване на мускулни влакна и поддръжка на нервна мрежа, растението изгражда разклонена архитектура от клетъчни стени, втвърдени с лигнин и целулоза. Коренът пробива почвения хоризонт, за да увеличи контактната си площ, докато листната маса максимизира приема на фотони. Замяната на този неподвижен профил с активна локомоция би била икономическо безумие от гледна точка на ресурсите – разходът на АТФ за придвижване никога не би се изплатил от приема на слънчева светлина.
Гъбите от своя страна представляват класически разложители, разчитащи на сапротрофно хранене. Техният мицел е сглобен от микроскопични нишки (хифи), чиято обща повърхност в един кубичен метър горска почва може да достигне десетки километри. Гъбата не вкарва храната вътре в тялото си; тя отделя ензими директно в субстрата, разгражда органичния материал външно и след това абсорбира готовите мономерни съединения. При тази стратегия изграждането на вътрешни органи за храносмилане е функционално излишно. Мицелът сам по себе си е едновременно стомах, всмукателна повърхност и транспортираща мрежа.
При животните ситуацията е коренно различна поради прехода към хетеротрофия с вътрешно приемане на хранителни субстрати. Жертвата или органичният детрит не се разпределят равномерно във водата така, че да бъдат абсорбирани през кожата, след като организмът прехвърли определен праг на масата.